
El cuerno del hocico permite reconocer a Ceratosaurus incluso cuando solo has visto un par de ilustraciones de dinosaurios. Sin embargo, ese adorno cuenta bastante menos sobre su alimentación que los dientes, las mandíbulas o la estructura de sus huesos. Hace unos 150 millones de años, este carnívoro compartía paisajes de Norteamérica con otros grandes depredadores. Explicar cómo encontraba su sitio entre ellos exige algo más que adjudicarle una presa exclusiva.
Lo conocemos por esqueletos, fragmentos y comparaciones anatómicas. Esas pruebas permiten reconstruir un animal bípedo de varios metros, pero no observar una jornada de caza. La diferencia importa especialmente en su caso: se le ha presentado como pescador habitual, especialista de las riberas e incluso equivalente jurásico de un cocodrilo. Algunas de esas propuestas merecen estudiarse. Ninguna autoriza a convertir una escena imaginada en un comportamiento demostrado.
Un carnívoro entre los grandes habitantes de Morrison
Ceratosaurus pertenece a los terópodos, el grupo de dinosaurios principalmente bípedos que incluye a numerosos carnívoros y también a las aves. Dentro de él forma parte de los ceratosaurios. No es una versión pequeña de Tyrannosaurus: ambos pertenecen a ramas distintas y vivieron separados por decenas de millones de años. La semejanza general de sus siluetas no borra esa distancia evolutiva.
Su registro norteamericano procede de la formación Morrison, una extensa sucesión de rocas del jurásico tardío. El Museo de Historia Natural de Utah señala hallazgos en varios estados y ejemplares de localidades como Cleveland-Lloyd. Las reconstrucciones habituales sitúan su longitud en torno a seis o siete metros, con diferencias entre individuos y estimaciones. Una cifra única de peso transmitiría una precisión que los fósiles no proporcionan.
Morrison tampoco fue un escenario inmóvil. Sus sedimentos representan ambientes y momentos diferentes. Encontrar dos géneros en esa formación permite compararlos como integrantes de una fauna amplia, pero demostrar que compartieron un lugar concreto requiere precisar la localidad y el nivel geológico.
Una cabeza llamativa que no explica por sí sola la caza
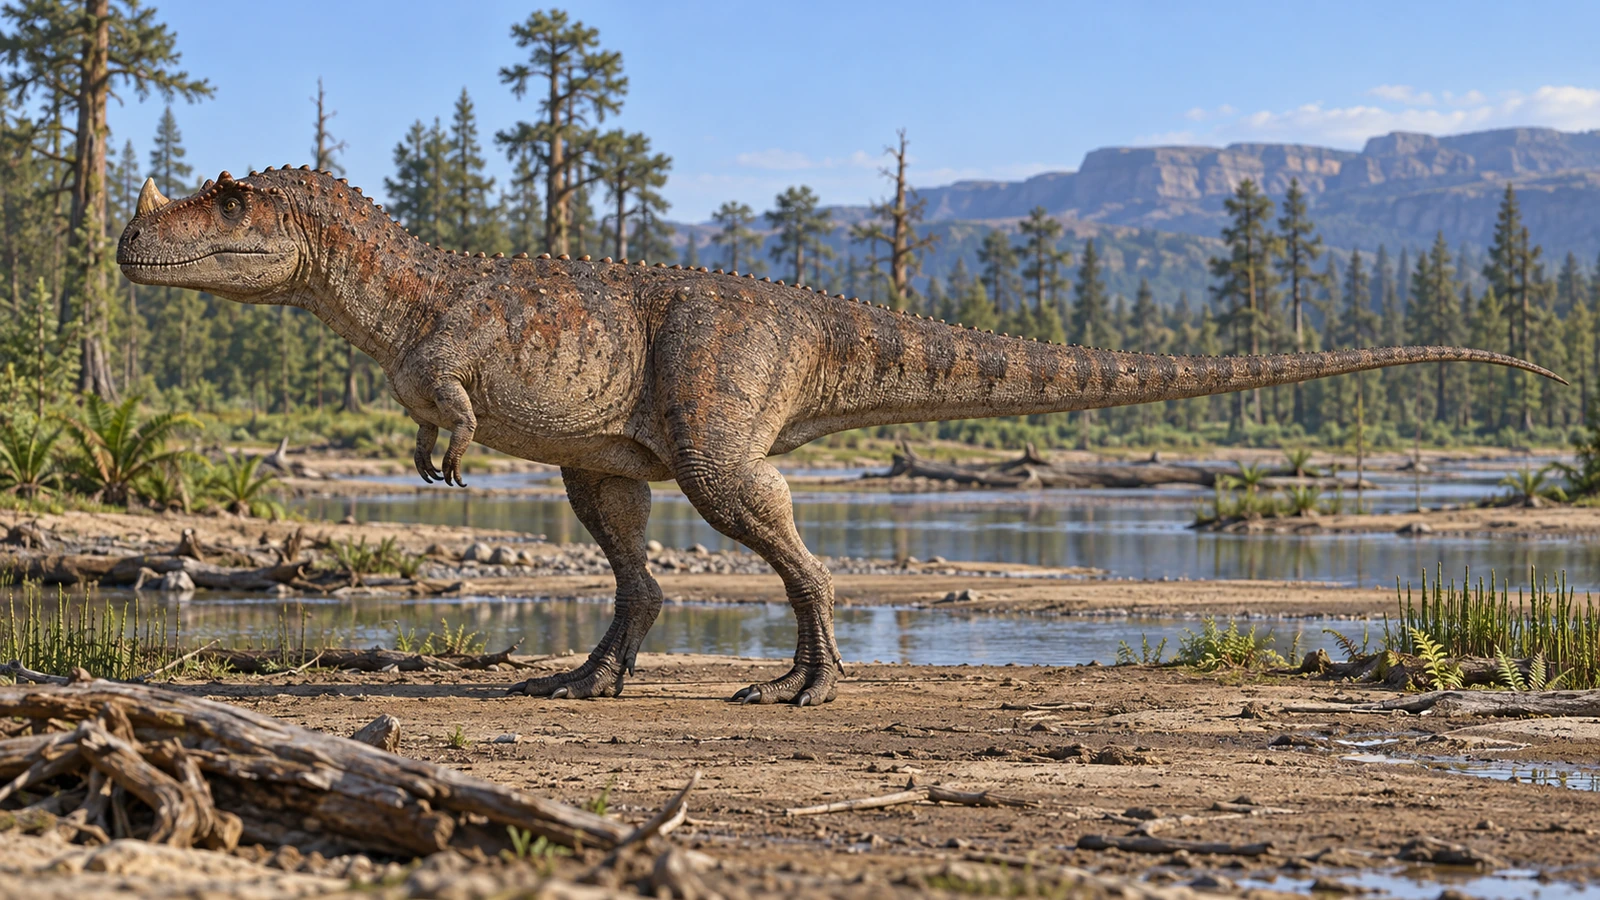
El cráneo era relativamente alto y llevaba un cuerno nasal acompañado de prominencias sobre los ojos. La parte que se conserva es ósea. La forma completa de los tejidos que la recubrían en vida resulta más difícil de recuperar. Por eso las ilustraciones que multiplican su altura o añaden colores intensos deben reconocerse como decisiones artísticas.
¿Para qué servía el cuerno? El reconocimiento entre individuos o la exhibición son posibilidades razonables. También se han discutido usos en interacciones físicas. El museo de Utah mantiene abierta su función. No tenemos una secuencia de fósiles que muestre al animal embistiendo presas con él. Convertirlo en un arma principal porque recuerda al de un rinoceronte sería trasladar automáticamente el comportamiento de un mamífero muy distinto.
Los dientes aportan una información más directa sobre su alimentación. Eran recurvados y cortantes, apropiados para penetrar tejidos. Algunos del maxilar superior resultaban proporcionalmente largos. Eso respalda una dieta carnívora, aunque no distingue por sí solo entre capturar un animal vivo y consumir uno muerto. Una misma herramienta puede intervenir en ambas actividades.
Brazos reducidos, cola y pequeños huesos en la piel
El cuerpo descansaba sobre las extremidades posteriores. La cola contribuía al equilibrio y a la organización de la musculatura locomotora. No debe dibujarse arrastrándose como un apoyo permanente. Las manos eran pequeñas y conservaban cuatro dedos, con reducción de parte de esa estructura. Tampoco funcionaban como manos humanas capaces de girar libremente la palma hacia el suelo.
La revisión osteológica de Madsen y Welles de 2000 sigue siendo una referencia para estudiar su esqueleto. Osteología significa precisamente estudio de los huesos. Permite comparar articulaciones, proporciones y superficies de inserción muscular. A partir de ahí se estiman movimientos posibles, pero las partes ausentes obligan a introducir márgenes de incertidumbre.
Otra peculiaridad es la presencia de osteodermos, pequeñas estructuras óseas desarrolladas en la piel, incluidos elementos a lo largo del dorso. No formaban una coraza semejante a la de los anquilosaurios. Su existencia no justifica añadir grandes espinas a todo el animal. Cada reconstrucción debe distinguir los elementos realmente conservados de las prolongaciones que el artista introduce para completar la silueta.
La especialización acuática sigue siendo una hipótesis
Una propuesta conocida atribuye a Ceratosaurus una relación especial con ríos y zonas húmedas. Se ha argumentado a partir de su anatomía y del reparto de ambientes entre los depredadores de Morrison. El problema aparece cuando esa posibilidad se simplifica hasta afirmar que era un pescador especializado. Visitar una ribera, poder nadar y depender de peces son tres cuestiones diferentes.
El estudio de Drumheller y colaboradores sobre marcas de mordedura, publicado en 2020, documentó un intenso aprovechamiento de cadáveres en Mygatt-Moore. El trabajo considera varios terópodos como posibles responsables. Identificar un mordedor exige comparar el tamaño de la marca y los detalles de sus dientes. La coincidencia con una especie presente en el yacimiento no basta para atribuirle todas las señales.
Estas evidencias encajan mejor con una discusión sobre oportunidades alimentarias que con un menú cerrado. Para demostrar dependencia de presas acuáticas sería especialmente útil reunir indicios independientes, como contenido digestivo inequívoco y adaptaciones funcionales consistentes. Mientras tanto, conviene describir la hipótesis y conservar su carácter provisional.
Compartir territorio no significa tener un reparto perfecto
Allosaurus, Ceratosaurus y Torvosaurus aparecen asociados a la fauna de Morrison. Sus diferencias de tamaño y anatomía pudieron favorecer un aprovechamiento distinto de los recursos. Eso no significa que cada uno tuviera reservada una presa y que nunca compitieran. En los ecosistemas, el reparto suele ser parcial y puede cambiar con la estación o con la edad de los animales.
Piensa en la diferencia entre un depredador joven y un adulto de la misma especie. Aunque compartan muchas características, no pueden abordar exactamente los mismos alimentos. Esa consideración ayuda a evitar modelos demasiado rígidos del jurásico. No demuestra qué capturaba cada individuo, pero explica por qué una lista de especies resulta insuficiente para reconstruir una red alimentaria.
El contexto también importa. Los sedimentos de Morrison conservan ríos, llanuras y variaciones en la disponibilidad de agua. Un cadáver situado cerca de una charca podía constituir un recurso aprovechable por distintos animales. Encontrar varios carnívoros cerca de él no sería, por sí mismo, una prueba de cooperación ni de vida estable en manada.
Los huesos revelan un crecimiento sorprendentemente rápido
Una investigación de Riley Sombathy, Patrick O’Connor y Michael D’Emic, publicada en 2025, examinó la microestructura ósea de varios individuos. La histología estudia los tejidos a pequeña escala. En un hueso fósil puede mostrar canales vasculares, reorganización interna y líneas asociadas a interrupciones del crecimiento.
Los autores encontraron señales de crecimiento rápido y estimaron tasas máximas anuales elevadas frente a otros ceratosaurios de su comparación. La muestra carecía de juveniles, una limitación expresamente reconocida. No sería correcto convertir el resultado en una edad exacta y universal a la que todos los ejemplares alcanzaban su tamaño adulto.
El interés está en recuperar parte de la historia vital del animal. Dos individuos pueden tener dimensiones parecidas y haber llegado a ellas mediante ritmos distintos. Para interpretarlos hace falta combinar tejidos y medidas. Además, las costillas y los huesos de las patas pueden conservar información complementaria: el remodelado interno elimina o modifica algunas señales, de modo que contar líneas sin estudiar el hueso completo puede resultar engañoso.
Qué tendría que aportar el próximo ejemplar
Un nuevo esqueleto completo permitiría comprobar proporciones que ahora dependen de pocos individuos. Un juvenil ayudaría a separar rasgos de crecimiento de diferencias entre especies. Una impresión de piel bien asociada ampliaría el conocimiento de su cobertura corporal. Son preguntas concretas que explican por qué un hallazgo pequeño puede ser tan útil como un cráneo espectacular.
La procedencia es decisiva. Registrar el estrato, la orientación de los restos y su relación con el sedimento permite reconstruir lo ocurrido antes del enterramiento. Un hueso aislado sin ese contexto conserva valor anatómico, pero pierde parte de su información ecológica. Incluso un diente debe estudiarse junto con la roca que lo contiene si queremos averiguar si llegó allí durante la vida del animal o fue transportado después.
Fuentes y lecturas
- Joshua Lively / Natural History Museum of Utah (2012). Ceratosaurus nasicornis.
- J. H. Madsen Jr. y S. P. Welles (2000). Ceratosaurus (Dinosauria, Theropoda), a revised osteology.
- R. Sombathy, P. M. O’Connor y M. D. D’Emic (2025). Osteohistology of the unusually fast-growing theropod dinosaur Ceratosaurus.
- S. K. Drumheller y colaboradores (2020). High frequencies of theropod bite marks provide evidence for feeding, scavenging, and possible cannibalism in a stressed Late Jurassic ecosystem.
- National Park Service (sin fecha indicada). Morrison Formation.
- Natural History Museum, Londres (sin fecha indicada). Ceratosaurus.
Volver al índice general de Dinosaurios
Anterior: Dinosaurios carnívoros del Jurásico tardío: ecología, competencia y distribución
Siguiente: Los primeros dinosaurios con plumas: el contexto jurásico