
El cretácico temprano no tuvo un único modelo de dinosaurio carnívoro. En distintos continentes vivieron depredadores de gran tamaño, cazadores pequeños y formas relacionadas con ambientes acuáticos. Algunos presentaban plumas y otros se conocen por esqueletos que conservan muy poca información de su cobertura corporal. La diversidad no consistía simplemente en añadir dientes más grandes a un diseño anterior.
Llamarlos «avanzados», como hace el título tradicional de este apartado, puede sugerir una mejora universal que la evolución no persigue. Es más preciso observar sus especializaciones. Un hocico alargado con dientes cónicos funciona de manera distinta a una mandíbula con dientes comprimidos y serrados. Un brazo robusto no tiene las mismas posibilidades que uno reducido. Para interpretar esas diferencias hay que relacionar anatomía, tamaño, ambiente y pruebas de alimentación. También conviene separar lo que muestra un fósil de las escenas de caza que completamos mediante comparación con animales vivos.
Dientes y mandíbulas que no hacían el mismo trabajo
Los terópodos constituyen la rama de dinosaurios que incluye a los principales carnívoros mesozoicos y a las aves. Sin embargo, no todos sus miembros eran estrictamente carnívoros. La identificación de una dieta se apoya en caracteres y restos concretos, no solo en pertenecer a un grupo. Dentro de los consumidores de vertebrados existían diferencias importantes en la forma de obtener y procesar alimento.
Un diente comprimido lateralmente con bordes dentados puede facilitar el corte de tejidos. Otro más cónico puede resistir esfuerzos diferentes y ayudar a retener una presa resbaladiza. Estas relaciones mecánicas orientan la interpretación pero no funcionan como etiquetas alimentarias infalibles. Los cocodrilos actuales muestran que dientes relativamente parecidos pueden intervenir sobre presas diversas.
También importa la mandíbula completa. La longitud del hocico, la posición de los músculos y las articulaciones condicionan fuerzas y movimientos. Una estimación de mordida depende de cómo se reconstruyan los tejidos blandos y de los puntos donde se aplique la fuerza. Comparar cifras sin explicar esos supuestos puede convertir modelos diferentes en una clasificación engañosa de quién mordía más fuerte.
Baryonyx y las pruebas de una alimentación variada
Baryonyx walkeri se conoce por un hallazgo inglés realizado en 1983 y descrito posteriormente. Su hocico alargado, dientes relativamente cónicos y gran garra de la mano contribuyeron a transformar la interpretación de los espinosáuridos. Este grupo no encajaba bien en la imagen de un terópodo dedicado exclusivamente a capturar grandes herbívoros terrestres.
El ejemplar principal conservaba escamas de peces y restos de un iguanodontio en la región abdominal, interpretados como contenido digestivo. Es una evidencia especialmente útil porque relaciona al consumidor con alimento concreto. Apoya una dieta que incluía peces pero no se limitaba necesariamente a ellos. No permite decidir si el dinosaurio terrestre fue cazado o aprovechado como carroña.
La gran garra ha inspirado escenas de animales que sacan peces del agua con un movimiento preciso. Esa conducta es una hipótesis plausible, no una acción conservada en el fósil. La función de una extremidad debe contrastarse con sus articulaciones y su amplitud de movimiento. Además, pescar junto a la orilla, vadear y perseguir presas completamente sumergido son comportamientos diferentes. La evidencia de uno no demuestra automáticamente los demás.
Yutyrannus y un gran cuerpo con filamentos
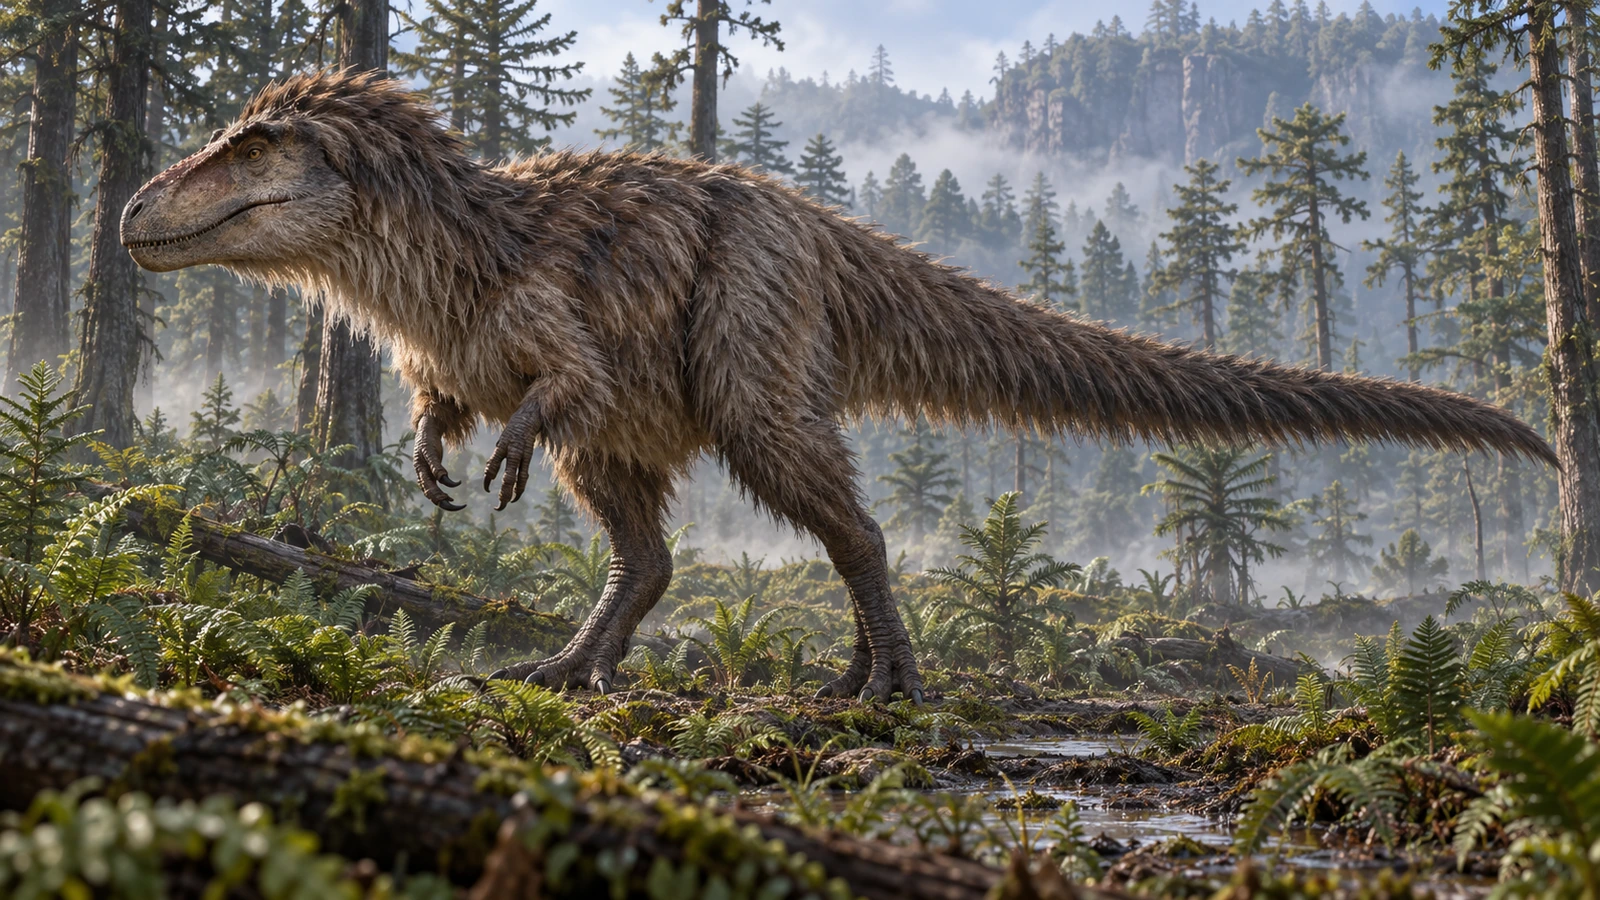
La descripción de Yutyrannus huali en 2012 se basó en tres esqueletos procedentes de la Formación Yixian, en China. Los fósiles conservaron filamentos que aportaron evidencia directa de cobertura corporal en un terópodo grande. Era un tiranosauroideo, un pariente de la rama que más tarde incluiría a Tyrannosaurus rex, aunque sus proporciones y extremidades no eran idénticas.
El animal adulto se ha estimado en torno a nueve metros de longitud. La combinación de gran tamaño y filamentos cuestionó la idea de que la cobertura de este tipo estuviera restringida a dinosaurios pequeños. Sin embargo, no establece por sí sola qué cantidad de plumaje tenía cada tiranosauroideo posterior. Los grupos emparentados pueden diferir y las condiciones ambientales también cambian.
Una función aislante resulta compatible con la presencia de filamentos y con las reconstrucciones relativamente frías de algunos ambientes de Asia oriental. También pudieron intervenir otras funciones. El color, la densidad exacta y la distribución completa no se conservan igual de bien en todas las regiones del cuerpo. Una reconstrucción visual debe completar esos huecos pero su apariencia no equivale a información observada directamente en el fósil.
Concavenator y la diversidad que también aparece en España
Concavenator corcovatus fue descrito en 2010 a partir de un esqueleto excepcional de Las Hoyas, en Cuenca. Vivió en el cretácico temprano y estaba relacionado con los carcarodontosaurios. Una de sus características más visibles es la elevación de algunas espinas neurales en la región anterior a la pelvis. Esa anatomía da a su perfil un aspecto singular.
La estructura elevada ha recibido distintas interpretaciones funcionales pero su mera presencia no demuestra una utilidad concreta. Exhibición y otras posibilidades deben evaluarse a partir de forma, tejidos asociados y comparación. Un dibujo puede mostrar un volumen externo plausible sin resolver la función biológica. Tampoco debe confundirse su perfil con la vela de Spinosaurus: son animales diferentes con configuraciones anatómicas distintas.
El trabajo original también interpretó ciertas protuberancias del antebrazo como posibles puntos de inserción de apéndices tegumentarios. Esa interpretación ha sido discutida. Las protuberancias son observaciones óseas; la presencia y naturaleza de las estructuras que se fijarían allí constituyen una inferencia. Conviene mantener esa distinción y no presentar un antebrazo plenamente emplumado como si estuviera conservado directamente sobre la roca.
Tamaño, competencia y comidas que rara vez se conservan
Depredadores de tamaños diferentes podían aprovechar presas y espacios distintos. La partición de recursos describe esa separación parcial de necesidades. No exige que cada especie tuviera una dieta exclusiva. Dos animales pueden consumir algunos recursos compartidos y diferenciarse por el tamaño de las presas, el ambiente o el modo de conseguirlas.
Para demostrar que competían directamente es necesario comprobar su convivencia. Pertenecer al cretácico temprano resulta insuficiente: el intervalo contiene más de cuarenta millones de años. También importa la formación y el nivel estratigráfico. Una lista de dinosaurios de todo un continente puede reunir especies que jamás compartieron un paisaje.
Las marcas de dientes y los huesos digeridos aportan información sobre alimentación pero no narran toda la secuencia. Una mordedura puede producirse durante una caza, después de la muerte o al disputar una carcasa. Los grupos de huellas tampoco prueban por sí solos una estrategia cooperativa. Una inferencia de comportamiento resulta más sólida cuando varias evidencias independientes apuntan a la misma explicación y se consideran alternativas menos espectaculares.
Una novedad de 2026 recuperada de una colección antigua
En octubre de 2026 se presentó Invictibellatrix amberina, un terópodo del cretácico temprano de la isla de Wight interpretado como un megaraptorano. El Museo de Historia Natural de Londres comunicó el hallazgo el 14 de octubre. El material principal es una parte posterior del cráneo que había ingresado en la colección en 1924. Su estudio muestra que un descubrimiento científico no siempre comienza con una excavación nueva.
La tomografía permitió examinar cavidades y estructuras internas para compararlas con otros terópodos. La asignación propuesta amplía el registro europeo del grupo. Las dimensiones corporales, las garras y la posible cobertura de plumas se reconstruyen principalmente mediante comparación con parientes, no porque se haya encontrado un cuerpo completo de esta especie.
Este ejemplo introduce una diferencia práctica entre reconocer un nuevo taxón y conocer toda su biología. Un fragmento informativo puede justificar una descripción científica mientras deja abiertas preguntas sobre locomoción y alimentación. Las futuras búsquedas podrán utilizar sus caracteres craneales para reconocer material adicional. Mientras tanto, la etiqueta de procedencia y el registro de ingreso de aquel fósil siguen siendo piezas esenciales de una investigación publicada más de un siglo después.
Fuentes y lecturas
- Natural History Museum. How did Baryonyx change what we knew about spinosaurs? (2019).
- Xing Xu y colaboradores. A gigantic feathered dinosaur from the Lower Cretaceous of China (2012).
- Francisco Ortega, Fernando Escaso y José Luis Sanz. A bizarre, humped Carcharodontosauria (Theropoda) from the Lower Cretaceous of Spain (2010).
- Natural History Museum. UK dinosaur fossil identified as new long-clawed predator (2026).
- Romain Amiot y colaboradores. Oxygen isotopes of East Asian dinosaurs reveal exceptionally cold Early Cretaceous climates (2011).
- Natural History Museum. Beyond Jurassic World: what we really know about dinosaurs and how (sin fecha indicada).
Fuentes consultadas el 14 de octubre de 2026.
Índice general de Dinosaurios | Anterior: Psittacosaurus: los inicios de los ceratopsios | Siguiente: Spinosaurus: adaptaciones al agua y un debate abierto